ハーディー・ワインベルグの法則徹底解説|成立条件と計算の罠を解明
高校生物の遺伝分野において、多くの受験生が一度は猛烈な苦手意識を抱く単元が集団遺伝学です。なかでも「ハーディー・ワインベルグの法則」は、教科書の公式を暗記しただけでは太刀打ちできない応用問題が頻出するため、共通テストや国公立大学二次試験を控えた学習者の前に巨大な壁として立ちはだかります。
1908年に英国の数学者G. H. ハーディとドイツの医師ヴィルヘルム・ワインベルクがそれぞれ独立に提唱したこの法則は、単なる受験テクニックにとどまらず、生物進化のメカニズムを解明するための基礎モデルです。なぜこの理論がこれほど学習者を悩ませるのか、そして試験本番で確実に得点源へ変えるにはどのような視点が必要なのか。予備校現場の最新データや実際の出題傾向を踏まえ、数式の背後にある論理構造を徹底的に紐解いていきます。
📌 【この記事の重要ポイントまとめ】
- 要点1:ハーディー・ワインベルグの法則は「ある一定の条件下で、世代を重ねても遺伝子プール内のアレル頻度・遺伝子型頻度が不変に保たれる」現象を示す集団遺伝学の根底モデル。
- 要点2:成立には「自由交配(任意交配)」「集団のサイズが十分大きい」「突然変異がない」「自然選択がない」「移入・移出がない」という5条件が必須。
- 要点3:計算問題を攻略する鍵は公式の丸暗記ではなく、潜性ホモ個体の頻度からアレル頻度を逆算する手順と、淘汰や致死遺伝子が働いた際の「遺伝子プール総数の変化」を可視化すること。
なぜ受験生を悩ませるのか?ハーディー・ワインベルグの法則が難解に感じる構造的背景
毎年、大手予備校の記述模試や共通テストリサーチにおいて、集団遺伝学分野の正答率は顕著な二極化を示します。「ハーディー・ワインベルグの法則は一体なぜ受験生を悩ませるのか?」という問いに対し、河合塾や駿台予備学校などで長年指導にあたる講師陣は「数学的確率思考と生物学的現象の架け橋が頭の中で構築できていないこと」を最大の要因に挙げます。
メンデルの遺伝の法則までは、個体同士の交配(単一の掛け合わせ)をチェッカーボード(パネットスクエア)で書き出す作業で視覚的に理解できます。ところが、ハーディー・ワインベルグの法則に突入した瞬間、視点が「1対1の個体交配」から「集団全体の配偶子がプールされた確率空間」へと一気にスケールアップします。ここで多くの学習者が、自分が計算している対象が「個体の数」なのか、「遺伝子の総数」なのか、あるいは「確率(頻度)」なのかを見失ってしまうのです。
ネット上の学習相談掲示板や知恵袋を調査しても、「公式 $p^2 + 2pq + q^2 = 1$ は覚えたのに、問題文に『潜性個体が成体になる前に半数が死亡した』と書かれた途端に立式できなくなる」「そもそもなぜ二乗が出てくるのか直感的に腑に落ちない」といった悲鳴が後を絶ちません。単なる数字のパズルとして処理しようとする姿勢こそが、出題者の仕掛けた罠に嵌まる直接の引き金となっています。
ハーディー・ワインベルグの法則の公式と遺伝子頻度の求め方をわかりやすく解説
この法則を制覇する第一歩は、小難しい定義を日常の身近なモデルに置き換えて捉え直すことです。法則の根幹は至って明快であり、「誰もえり好みをせず、外からの出入りもなく、偶然の偏りも起きない巨大な集団では、親世代が放出した配偶子の割合がそのまま子世代の遺伝子型を決定し、その比率は孫世代以降も永遠に変わらない」という事実を証明した点にあります。
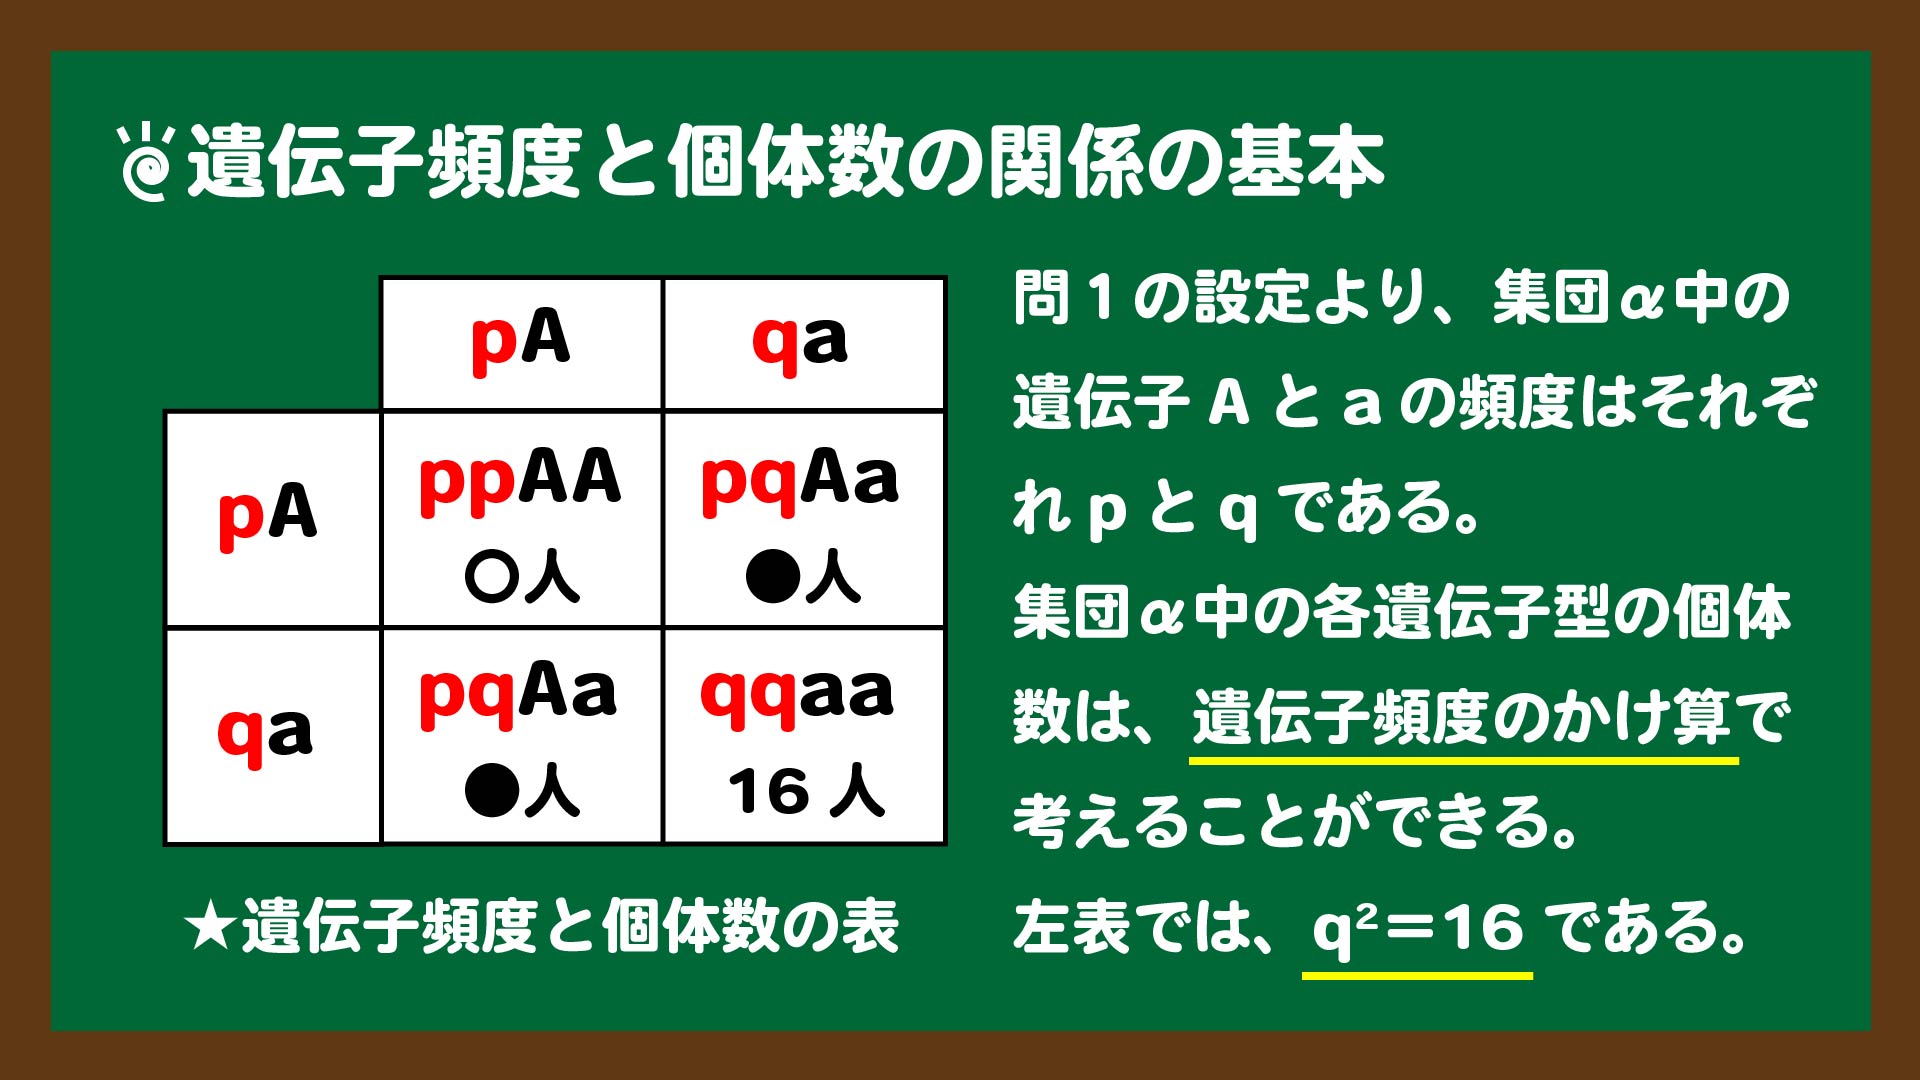
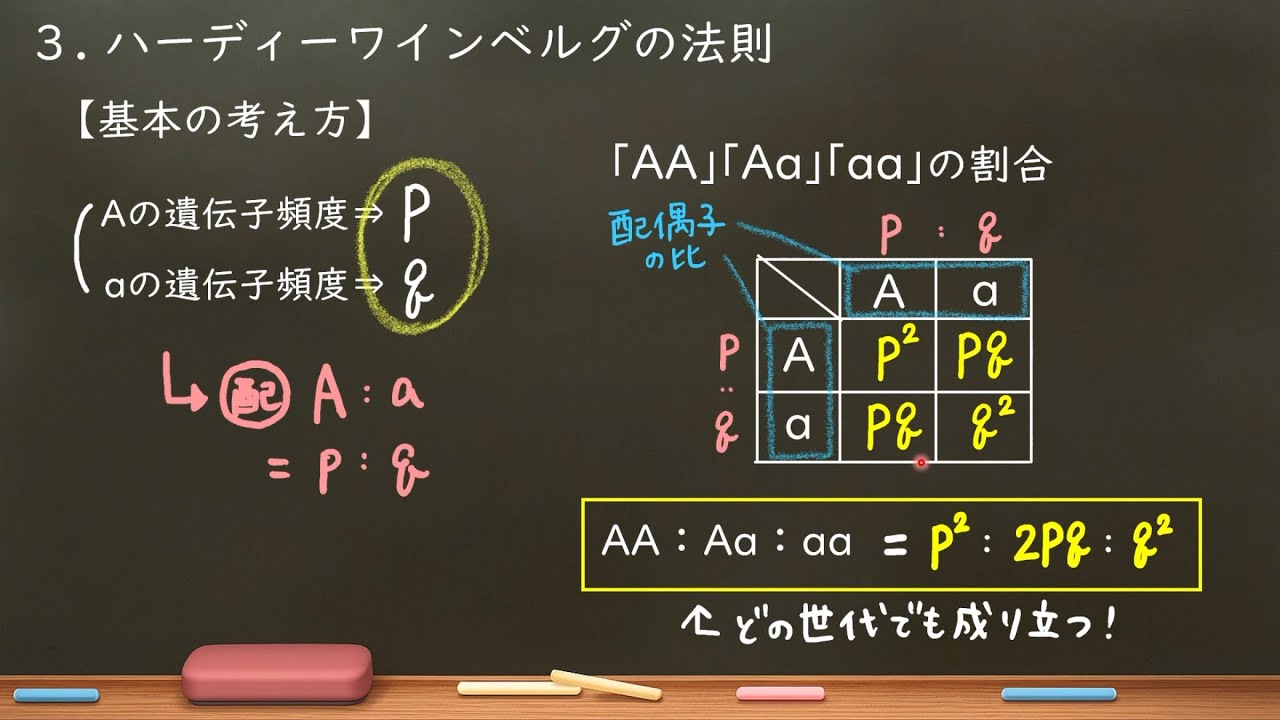
いま、ある1対の対立遺伝子(アレル)$A$ と $a$ を考えます。集団内の配偶子プールにおいて、$A$ を持つ精子や卵の頻度を $p$、$a$ を持つ精子や卵の頻度を $q$ と置きます。遺伝子の種類はこの2つだけであるため、当然ながら以下の前提式が成り立ちます。
$p + q = 1$ (すなわち $q = 1 - p$)
集団内の個体が完全にランダムに受精(任意交配)を行うとき、次世代で誕生する個体の遺伝子型の割合は、それぞれの確率の掛け算で導き出されます。
- 遺伝子型が $AA$ となる確率:精子 $A(p) \times \text{卵 } A(p) = \mathbf{p^2}$
- 遺伝子型が $Aa$ となる確率:精子 $A(p) \times \text{卵 } a(q) + \text{精子 } a(q) \times \text{卵 } A(p) = \mathbf{2pq}$
- 遺伝子型が $aa$ となる確率:精子 $a(q) \times \text{卵 } a(q) = \mathbf{q^2}$
これらすべての組み合わせを足し合わせたものが、全集団を表す次の展開公式です。
$(p + q)^2 = p^2 + 2pq + q^2 = 1$
この次世代が成熟し、再び配偶子をつくるとき、集団全体から生み出される配偶子中の $A$ の割合を再計算してみましょう。$AA$(頻度 $p^2$)は $A$ だけを100%つくり、$Aa$(頻度 $2pq$)は $A$ と $a$ を半分ずつ(50%)つくります。したがって、次世代の配偶子プールにおける $A$ の頻度は $p^2 + \frac{1}{2}(2pq) = p^2 + pq = p(p + q)$ となり、$p + q = 1$ ですから見事に $p$ に戻ります。これこそが「世代を経ても遺伝子頻度は変わらない」、すなわちハーディー・ワインベルグ平衡(Hardy-Weinberg equilibrium; HWE)と呼ばれる状態です。
法則が崩れる現場を解剖|成立に必要な5つの条件と成り立たない理由
集団遺伝学において最も重要な認識は、「自然界においてハーディー・ワインベルグの法則が完璧に成立する集団はほぼ存在しない」という事実です。G. H. ハーディとW. ワインベルクが示した真の功績は、不変の法則を見つけたこと以上に、「この条件が崩れたときにこそ、生物は進化する」という進化の基準点(帰無仮説)を提示したことにあります。
法則が完全に成立するためには、厳密に以下の5つの条件が同時に満たされなければなりません。
| 成立条件 | 条件が崩れるメカニズム(進化的要因) | 現実の生態系・自然界の動向 | 試験・学術における重要指標 |
|---|---|---|---|
| 1. 任意交配(自由交配) | 性的選択、同類交配、近親交配 | 配偶相手の選好性(求愛行動や体格差)が働くのが常態 | ヘテロ接合体過剰やホモ過剰の偏りを生む主要因 |
| 2. 集団の大きさが十分大きい | 遺伝的浮動、びん首効果、創始者効果 | 個体群縮小により、偶然の確率で特定アレルが消失・固定する | 小集団(数頭〜数百頭)での計算問題で頻出 |
| 3. 突然変異が起きない | 新規アレルの発生($A \rightarrow a$ への変異など) | 1世代あたり $10^{-5} \sim 10^{-6}$ 程度の確率で不可逆的に発生 | 短期的には無視できるが長期の進化解析で考慮 |
| 4. 自然選択が働かない | 適応度の差による生存率・繁殖率の変動 | 環境変化、捕食圧、抗生物質耐性など常に淘汰圧が存在 | 共通テスト・二次試験の計算問題で最も頻繁に課される設定 |
| 5. 他集団との移入・移出がない | 遺伝子流動(外来遺伝子の流入、個体の拡散) | 渡り鳥の移動や花粉の飛散、人間活動による分断と結合 | 島嶼生物学や移入アレル計算で扱われる応用テーマ |
これら5つの条件のうち、どれか1つでも崩れた瞬間、遺伝子頻度は世代ごとに変動します。すなわち、ハーディー・ワインベルグの法則が成り立たない理由そのものが「進化が起きる原動力」なのです。この逆説的構造を捉えておくことが、単なる丸暗記から脱却する最大の足がかりとなります。

【実態検証】予備校現場と過去問データから判明した「典型的なつまずきポイント」
近年の大学入学共通テストおよび国公立大二次試験の採点講評を分析すると、受験生が壊滅的な減点を食らう典型パターンが鮮明に浮かび上がってきます。その最たるものが、「潜性(劣性)ホモ個体に対する選択(淘汰)が加わった直後の次世代計算」です。
例えば、過去の入試問題でも繰り返し類題が出題されている典型的なケースを見てみましょう。
【典型問題のケーススタディ】
ある生物集団において、$A$ と $a$ の初期遺伝子頻度を $p = 0.6$、$q = 0.4$ とする。この集団が無作為交配を行い次世代(F1)を残した。しかし、生まれた個体のうち遺伝子型が $aa$ である潜性ホモ個体のみが成体になる前に病気で全滅した。この生き残った成体集団が再び任意交配して次世代(F2)をつくるとき、F2における遺伝子型 $Aa$ の個体頻度を求めよ。
予備校の採点現場において、受験生の約4割がここで致命的な誤答を犯します。その代表例が「$aa$ が全滅したのだから、残った $AA$ と $Aa$ の比率から $q$ を単純に半分にして再計算する」という短絡的アプローチや、生き残った成体集団の割合の合計が「$1.0$ ではなくなっている」点を見落とすミスです。
実際にF1世代が誕生した直後の頻度は以下の通りです。
- $AA$:$p^2 = (0.6)^2 = \mathbf{0.36}$
- $Aa$:$2pq = 2 \times 0.6 \times 0.4 = \mathbf{0.48}$
- $aa$:$q^2 = (0.4)^2 = \mathbf{0.16}$ (※これがすべて死亡して消滅)
ここで生き残った成体の合計は $0.36 + 0.48 = \mathbf{0.84}$ です。この「0.84」を集団の母数(全体を1とする基準)へと正規化し直さなければなりません。生き残った成体におけるそれぞれの比率は、
- $AA$ の割合:$\frac{0.36}{0.84} = \frac{36}{84} = \mathbf{\frac{3}{7}}$
- $Aa$ の割合:$\frac{0.48}{0.84} = \frac{48}{84} = \mathbf{\frac{4}{7}}$
ここから次世代(F2)をつくる配偶子プール内の $a$ の頻度 $q'$ を求めると、$a$ を供給するのは $Aa$(割合 $\frac{4}{7}$)が半分($\frac{1}{2}$)の配偶子に $a$ を渡す時だけですから、
$q' = \frac{4}{7} \times \frac{1}{2} = \mathbf{\frac{2}{7}}$ (したがって $p' = 1 - \frac{2}{7} = \mathbf{\frac{5}{7}}$)
生き残った成体同士が再び任意交配を行うため、F2における $Aa$ の出現頻度は $2p'q'$ となり、計算結果は $2 \times \frac{5}{7} \times \frac{2}{7} = \mathbf{\frac{20}{49} \fallingdotseq 0.408}$ と導かれます。共通テストではこの「淘汰直後の母数の再規格化」を怠り、選択肢の中から消去法で間違った数値を選んでしまう受験生が毎年大量に発生しているのです。
一般に知られていない盲点とネットの誤解|「顕性の法則でいずれ顕性ばかりになる」は本当か?
インターネット上のQ&Aサイトや高校生の素朴な疑問として、今なお根強く見られる巨大な誤解があります。それが「顕性遺伝子(優性遺伝子)は潜性遺伝子(劣性遺伝子)よりも強いのだから、何世代も交配を繰り返していけば、最終的に世界は顕性遺伝子ばかりになるのではないか?」という言説です。
実は、この疑問こそがハーディー・ワインベルグの法則が誕生した歴史的な発端そのものでした。1900年にメンデルの法則が再発見された直後、イギリスの著名な統計学者ウドニー・ユール(Udny Yule)が「短指症(顕性の遺伝病)がなぜ集団内で多数派にならないのか。メンデルの法則が正しいなら、人口の4分の3が短指症になるはずだ」と誤った主張を展開し、当時の学界を大混乱に陥れました。
クリケット仲間を通じてこの議論を耳にした数学者G. H. ハーディは、1908年に科学雑誌『Science』へわずか2ページの極めて簡潔な論文(手紙)を寄稿します。彼がそこで数式を用いて証明したのは、「表現型としての顕性と、集団内における遺伝子の出現頻度は全くの別物である」という冷徹な事実でした。
強さ(発現のしやすさ)と多さ(頻度)は連動しません。自然選択による有利・不利が働かない限り、遺伝子頻度が $p = 0.01$ であれば、何万世代交配を繰り返してもその頻度は $0.01$ のまま保存されます。ネット上で時折見られる「ABO式血液型でO型(潜性)が消滅する」といった都市伝説も、集団遺伝学の基礎を学べば論理的にあり得ない誤謬であることが明確に理解できます。
【プロの結論】高校生物・共通テスト対策で差をつける実践演習テクニックと適性判断
共通テストの理科において高得点を狙う受験生に向けて、予備校の現場検証から導き出された「演習テクニック」と「学習適性の判断基準」を整理します。
【プロの結論】おすすめできる学習法・慎重になるべき学習法の判断基準
集団遺伝学の攻略にあたっては、自分の現状の学習フェーズに応じて採用すべきアプローチが完全に分かれます。
- 即座に取り入れるべき学習法(向いている人):
- 「配偶子プール図(碁盤目)」の常時作図:数式を暗記する前に、縦軸と横軸に $p(A)$ と $q(a)$ を配した面積図を必ず自力で書く学習者。視覚的理解が定着している人は、問題文に「致死」「一部淘汰」「移入」などの特殊条件が加わっても面積の引き算で直感的に解き進められます。
- 潜性ホモ個体($q^2$)から攻める逆算手順の徹底:表現型の外見から遺伝子型を100%特定できるのは潜性ホモ($aa$)のみです。問題文を読んだら真っ先に $aa$ の個体数や割合を探し、その平方根をとって $q$ を割り出し、引き算で $p = 1 - q$ を出すルーティンを身体に染み込ませている人はケアレスミスが激減します。
- 今すぐ見直すべき危険な学習法(慎重になるべき人):
- 展開公式だけを呪文のように暗唱する勉強法:「$p^2 + 2pq + q^2 = 1$」という文字列だけを暗記している人は、共通テスト特有の「実験データからの考察問題」で集団が平衡状態にない(カイ二乗検定等で条件不成立を見抜く)設問が出た瞬間に破綻します。
- 単位(個体数・遺伝子数・頻度)を混同したまま途中計算を進める学習法:「個体数400」の集団には「遺伝子が800個」存在します。この当たり前の倍率関係を意識せず、数字だけをガチャガチャと弄ぶ計算スタイルは命取りになります。
【ハーディー ワイン ベルグ の 法則】に関するよくある質問(FAQ)
Q1:ハーディー・ワインベルグの法則が成り立たない時、集団では具体的に何が起きているのですか?
A1:集団内で「進化」が起きています。5つの成立条件(任意交配、無限大の集団、突然変異なし、自然選択なし、移出入なし)のいずれかが破綻したことを意味し、具体的には環境変化による淘汰圧、特定の配偶者を選ぶ性淘汰、あるいは小集団での遺伝的浮動によって対立遺伝子のバランスが書き換えられている最中であると解釈されます。
Q2:3つ以上の複対立遺伝子(例えばABO式血液型のA、B、Oなど)がある場合もこの法則は使えますか?
A2:完全に適用可能です。遺伝子 $A$ の頻度を $p$、$B$ の頻度を $q$、$O$ の頻度を $r$ と置くと、$p + q + r = 1$ となり、集団の展開公式は $(p + q + r)^2 = p^2 + q^2 + r^2 + 2pq + 2qr + 2rp = 1$ で表されます。表現型がO型(遺伝子型 $OO$)の頻度は $r^2$ となるため、まずO型の出現比率から $r$ を算出して解き進めるのが定石です。
Q3:共通テスト本番で遺伝子頻度の計算が出題された際、最速で解くコツはありますか?
A3:最大の時短テクニックは「問題文の集団がハーディー・ワインベルグ平衡にあるかどうか」を最初に確認することです。「平衡状態にあるものとする」という記述があれば、潜性ホモ個体の割合から即座に平方根(ルート)をとって $q$ を求められます。逆に「淘汰が起きた」「世代交代で比率が変わった」という文脈であれば公式を捨て、生き残った個体の遺伝子総数(アレル数)を書き出す「直接カウント法」に切り替えるのが最も安全かつ最速です。
まとめ:集団遺伝学の本質を掴み共通テストを突破する指針
ハーディー・ワインベルグの法則は、一見すると抽象的な数学パズルのように見えますが、その根底にあるのは「命の連続性と進化の力学」を解き明かすための極めて美しい論理体系です。何の変化も起きない理想的な静止状態(帰無モデル)を厳密に定義したからこそ、生物学者たちは自然界で観測される遺伝子頻度の揺らぎから「いま、この集団でどんな淘汰圧や環境変動が起きているのか」を科学的に特定できるようになりました。
共通テストをはじめとする近年の入試問題は、単なる知識の再生から「未知の実験データを前に、論理の定規を当てて変化の要因を考察する力」を問う形式へと完全にシフトしています。成立に必要な5つの前提条件を深く噛み締め、遺伝子プール全体の広がりをイメージできるようになれば、この分野はあなたにとって最大の得点源となるはずです。 (出典: ハーディー ワイン ベルグ の 法則(Yahoo!ニュース))
毎日更新されるトレンド情報を分析・発信中。役立つ裏技やおすすめ情報を分かりやすく紹介します。